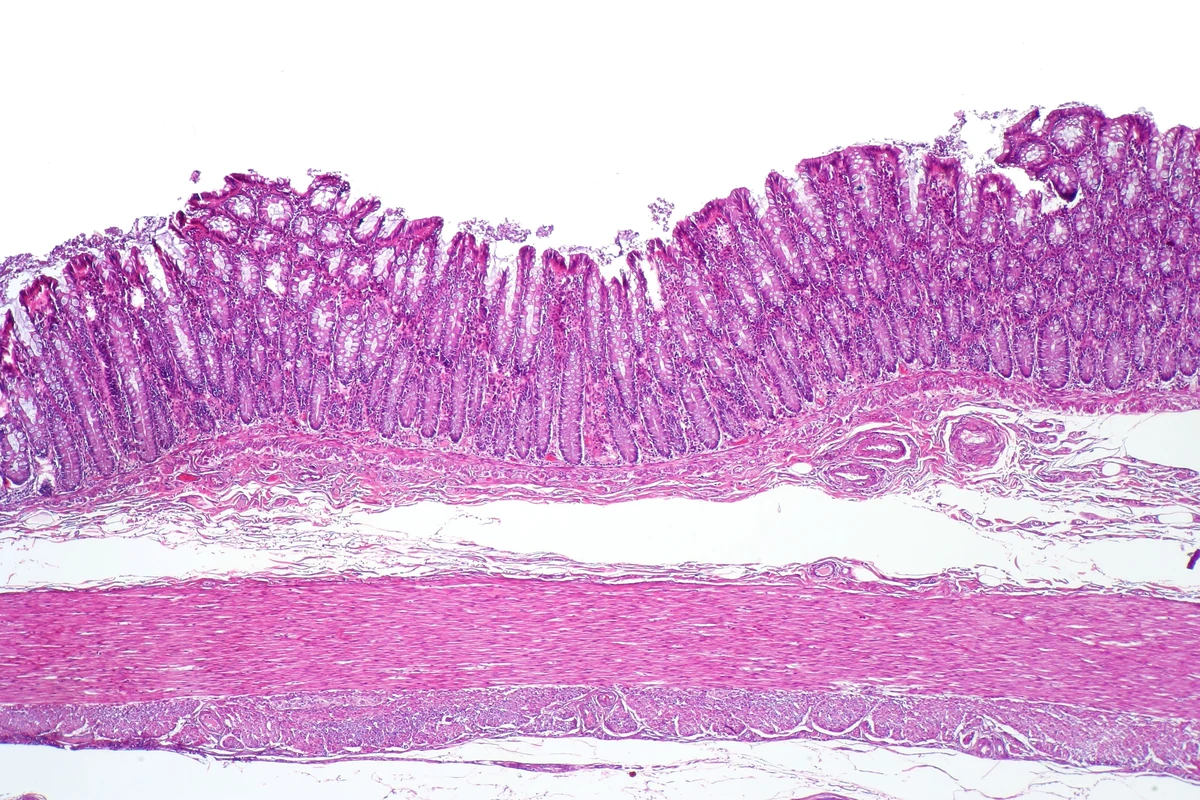
El NAD+ es una de las coenzimas más ocupadas de la célula. Interviene en el metabolismo energético, en la reparación del daño del ADN y en la actividad de las desacetilasas. Como su nivel desciende con la edad y con la inflamación crónica, devolver el NAD+ se ha convertido en uno de los relatos de salud más insistentes de los últimos años, con ácido nicotínico, nicotinamida, NR y NMN turnándose en los estantes.
Ese relato descansa sobre un supuesto: que el huésped procesa el precursor por su cuenta. Los manuales describen tres grandes vías para mantener el pool de NAD+: la síntesis de novo, la ruta de Preiss-Handler y la vía de rescate cuya enzima limitante es NAMPT. Casi todos los precursores comerciales acaban haciendo cola en esa última puerta.
El estudio nuevo formuló una pregunta que rara vez se plantea de frente: ¿podrían los microbios que viven en el intestino estar suministrando también precursores de NAD+ al huésped? La respuesta es sí, y la molécula resultante era una cuya identidad se había leído mal: N-metilnicotinamida con el metilo sobre el nitrógeno amídico, a la que los autores llaman N-MNA.
Hay un detalle químico fácil de pasar por alto. La N-MNA es un isómero estructural de la conocida N1-MNA: se diferencian solo en la posición del grupo metilo, y durante años se la había despachado como un producto de degradación de la nicotinamida. La cromatografía líquida acoplada a espectrometría de masas separó ambas y reveló que varias especies comensales secretan en cantidad ese supuesto desecho.
Quienes la producen no son actores marginales. En la lista aparecen bacterias comensales bien estudiadas; los experimentos de colonización en animales libres de gérmenes confirmaron que se genera dentro del intestino, y al reducir la microbiota con antibióticos la N-MNA fecal cayó en picado. La cadena de origen queda cerrada: no llega con la comida, la fabrican las bacterias.
La comparación clínica resulta aún más sugerente. En muestras de personas con enfermedad inflamatoria intestinal, la N-MNA aparecía claramente baja, y los valores bajos acompañaban a la elevación de calprotectina y a la pérdida de diversidad microbiana. Es una correlación, desde luego, pero invita a una hipótesis natural: ¿podría la reparación epitelial lenta deberse en parte a la escasez de esta línea de suministro?
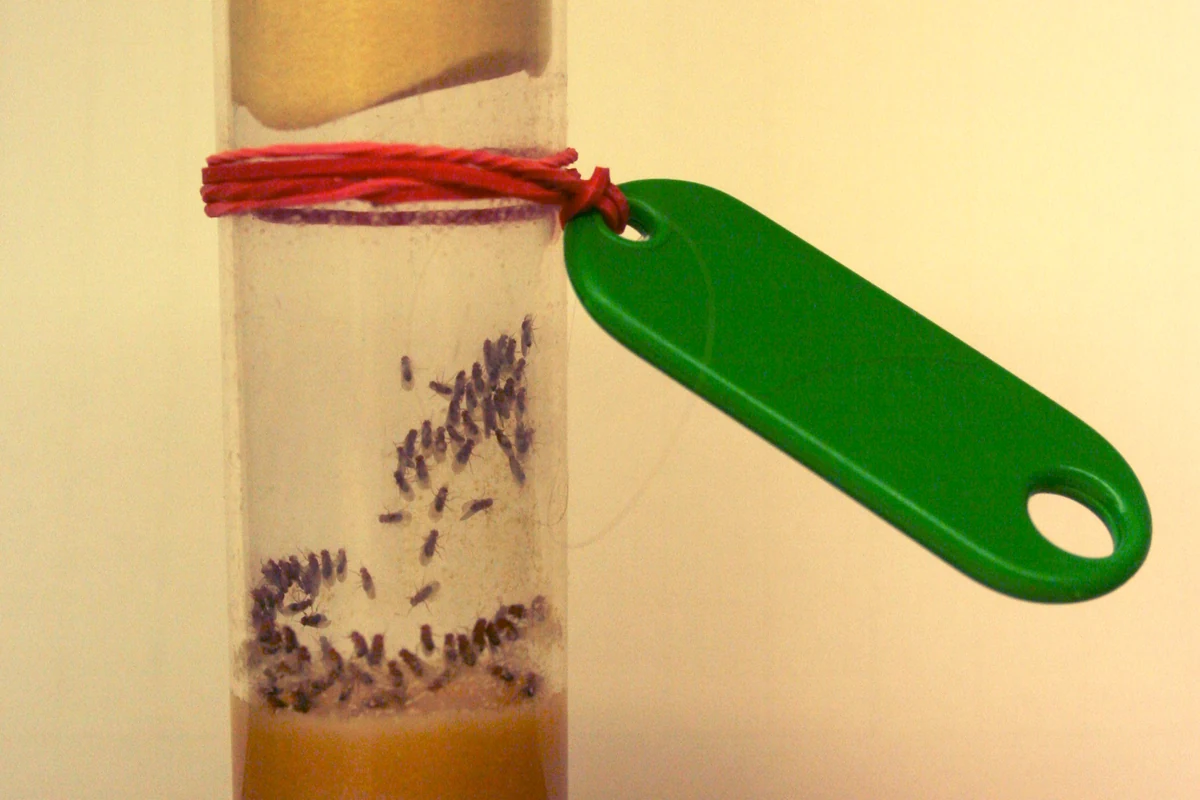
Para demostrar que la molécula no se limita a pasar de largo se recurrió al marcaje con isótopos estables. La N-MNA marcada fue captada con rapidez por moscas de la fruta, ratones y células epiteliales intestinales humanas, y entró en el ciclo redox del NAD+. También la aprovecharon células no epiteliales, lo que apunta a un precursor de uso amplio y no a una curiosidad local.
Lo que hizo incorporarse a los especialistas en metabolismo fue la asignación de la ruta. Tanto el bloqueo genético como el farmacológico señalaron lo mismo: la N-MNA circula por Preiss-Handler y no depende de la vía de rescate de NAMPT. Esquiva por tanto el cuello de botella donde se agolpan los suplementos y que suele estrecharse con la edad, y repone el pool por una puerta lateral.
Las pruebas funcionales encajan. Activado el eje NAD+–SIRT1, proliferaron más las células madre intestinales, los organoides crecieron mayores y aumentaron las células marcadas con Lgr5. En un modelo de colitis, el suplemento produjo una reparación epitelial observable y un beneficio en supervivencia. Molécula, célula y tejido quedaron enlazados paso a paso.
La molécula tiene además una segunda identidad: cede un grupo metilo a las células del huésped. Aportar a la vez NAD+ y metilo significa pisar dos líneas, el metabolismo energético y la regulación epigenética. Llamarla mediadora de regeneración del cometabolismo entre microbios y huésped resulta más exacto que llamarla un precursor más.
La advertencia más útil para el lector general es resistirse a convertir esto en una lista de la compra. El artículo presenta mecanismos y modelos animales; la dosis eficaz en humanos, la seguridad a largo plazo y la posibilidad de elevar de forma estable la N-MNA intestinal con dieta o probióticos siguen abiertas. Traducir un paper de mecanística en una recomendación de producto se salta más de un ensayo clínico.
Pero sí cambia la forma de preguntar. Tendemos a imaginar el metabolismo como una fábrica que el huésped gestiona en solitario, con materia prima traída de fuera. Este trabajo recuerda que al lado viven colaboradores que aportan sustrato, editan moléculas y a veces deciden si una ruta está bien alimentada. Antes de preguntar qué añadir, merece la pena preguntar quién lo está fabricando por nosotros.
Las cuestiones que quedan ya están nítidas: qué patrones dietéticos sostienen a los productores de N-MNA, cuánto de la relación entre disbiosis y reparación lenta pasa por esta vía, y si la molécula puede convertirse en un marcador medible de salud. Lo respondido es solo el comienzo; el valor está en lo que sigue sin respuesta.
Comentarios