Le NAD+ est l'une des coenzymes les plus occupées de la cellule. Métabolisme énergétique, réparation des dommages de l'ADN, activité des désacétylases : presque tout passe par elle. Comme son taux décline avec l'âge et l'inflammation chronique, « restaurer le NAD+ » est devenu l'un des récits de santé les plus insistants, avec l'acide nicotinique, le nicotinamide, le NR et le NMN qui se succèdent en rayon.
Ce récit repose sur un présupposé : l'hôte traite le précurseur lui-même. Les manuels décrivent trois grandes voies pour maintenir le pool de NAD+, la synthèse de novo, la voie de Preiss-Handler et la voie de sauvetage dont l'enzyme limitante est NAMPT. La quasi-totalité des précurseurs commercialisés finissent à la porte de cette dernière.
L'étude nouvelle pose une question rarement formulée aussi frontalement : les microbes qui vivent dans l'intestin fournissent-ils eux aussi des précurseurs de NAD+ à l'hôte ? La réponse est oui, et la molécule en question était justement une dont l'identité avait été mal lue : la N-méthylnicotinamide portant son méthyle sur l'azote amidique, que les auteurs appellent N-MNA.
Le détail chimique est facile à manquer. La N-MNA est un isomère de structure de la N1-MNA bien connue, à une seule position du groupe méthyle près ; on l'avait longtemps rangée parmi les déchets de la dégradation du nicotinamide. La chromatographie liquide couplée à la spectrométrie de masse a séparé les deux et révélé que plusieurs espèces commensales sécrètent en abondance ce prétendu déchet.
Les producteurs ne sont pas des figurants. Plusieurs bactéries commensales bien étudiées figurent sur la liste ; des expériences de colonisation chez des animaux axéniques ont confirmé la production dans l'intestin, et la réduction du microbiote par antibiotiques a fait chuter la N-MNA fécale. La chaîne d'origine se referme : elle ne vient pas de l'assiette, elle est fabriquée sur place.
Le volet clinique est plus suggestif encore. Dans des échantillons de personnes atteintes de maladie inflammatoire chronique de l'intestin, la N-MNA était nettement plus basse, et cette baisse accompagnait une élévation de la calprotectine et une perte de diversité microbienne. Ce n'est qu'une corrélation, bien sûr, mais elle suggère une hypothèse naturelle : une réparation épithéliale lente viendrait-elle en partie d'un approvisionnement déficient ?
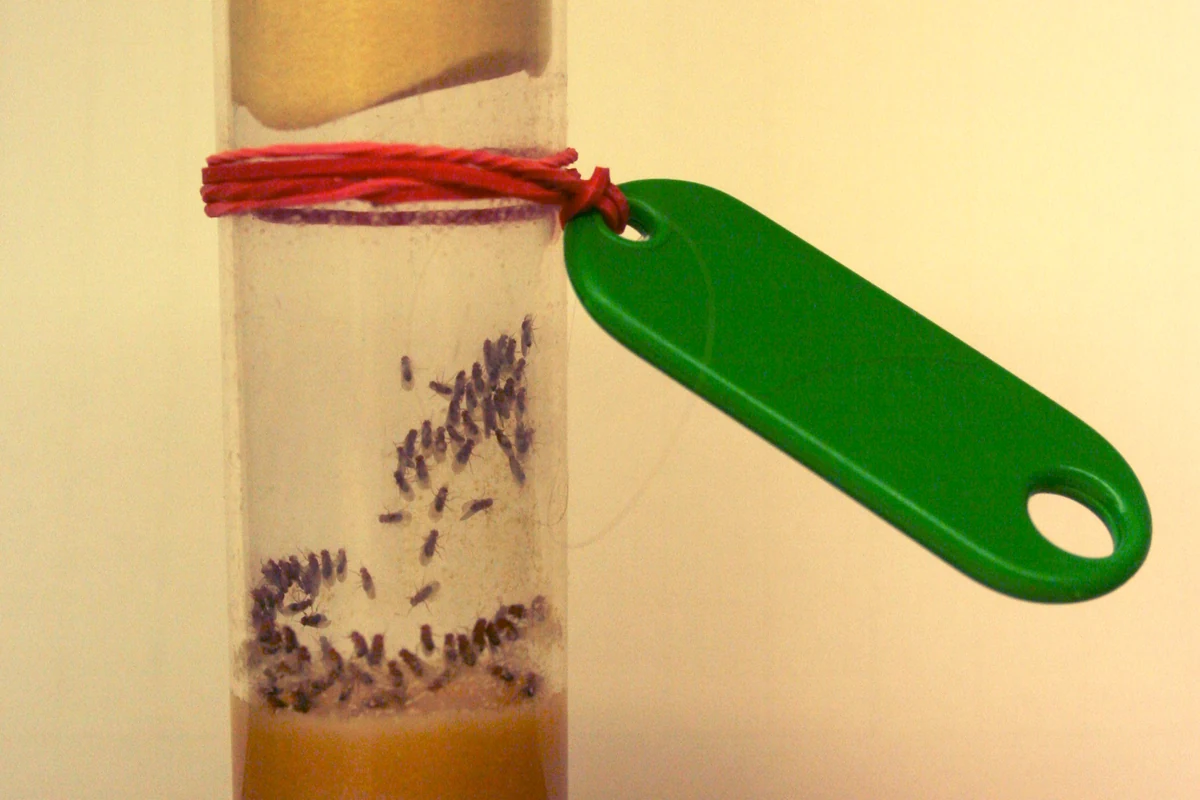
Pour prouver que la molécule ne fait pas que passer, l'équipe a utilisé un marquage isotopique stable. La N-MNA marquée a été rapidement captée par des drosophiles, des souris et des cellules épithéliales intestinales humaines, puis intégrée au cycle d'oxydoréduction du NAD+. Des cellules non épithéliales l'exploitent aussi : c'est un précurseur largement utilisable, non une curiosité locale.
Ce qui a fait se redresser les spécialistes du métabolisme, c'est l'attribution de la voie. Inactivation génétique et blocage pharmacologique désignent la même conclusion : la N-MNA emprunte Preiss-Handler et ne dépend pas de la voie de sauvetage NAMPT. Elle contourne donc le goulet d'étranglement où se pressent les compléments et qui tend à se resserrer avec l'âge, réalimentant le pool par une porte latérale.
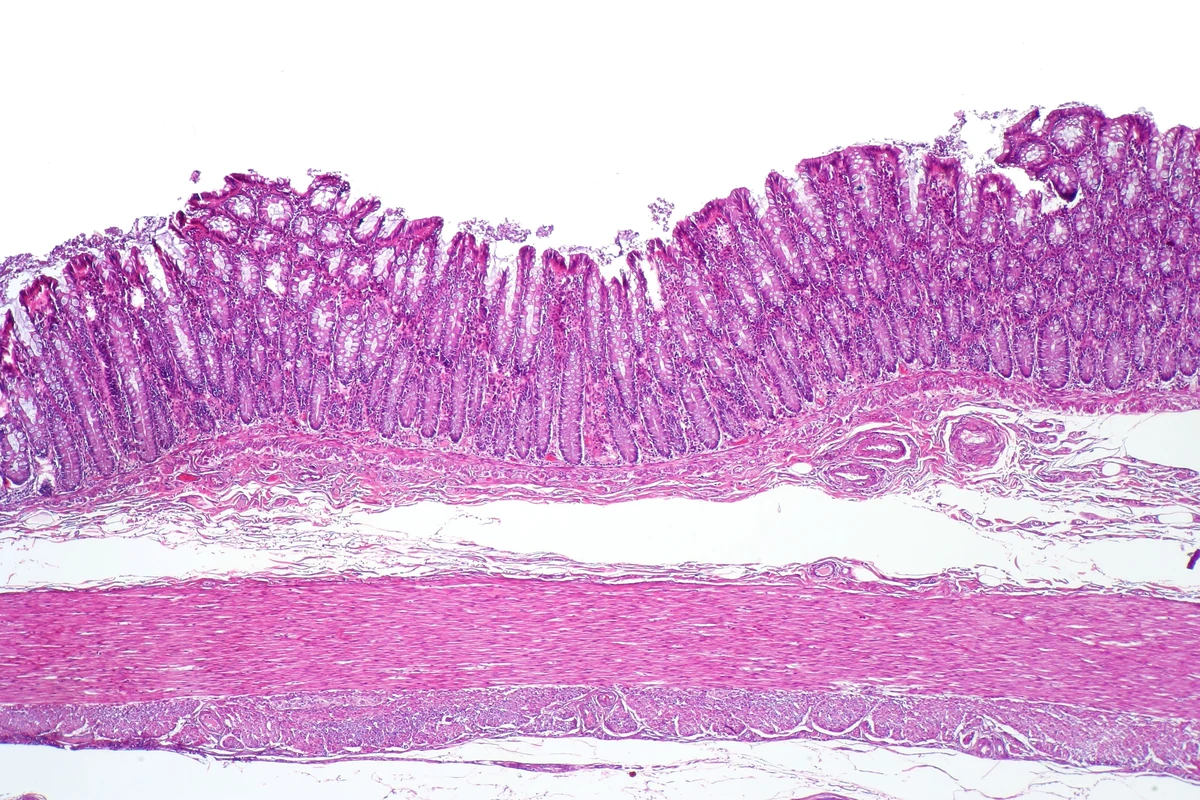
Les preuves fonctionnelles s'alignent. Une fois l'axe NAD+–SIRT1 activé, les cellules souches intestinales prolifèrent davantage, les organoïdes grossissent et les cellules marquées Lgr5 augmentent. Dans un modèle de colite, la supplémentation a apporté une réparation épithéliale observable et un bénéfice de survie. Molécule, cellule, tissu : la chaîne se noue maille après maille.
La molécule a une seconde identité : elle cède aussi un groupe méthyle aux cellules de l'hôte. Fournir à la fois du NAD+ et du méthyle, c'est poser un pied dans le métabolisme énergétique et l'autre dans la régulation épigénétique. Parler de médiateur de régénération issu du cométabolisme entre microbes et hôte est plus juste que parler d'un précurseur de plus.
La mise en garde la plus utile pour le lecteur est de ne pas transformer cela en liste de courses. L'article présente des mécanismes et des modèles animaux ; dose efficace chez l'humain, sécurité à long terme, capacité de l'alimentation ou des probiotiques à élever durablement la N-MNA intestinale restent ouvertes. Passer d'un article de mécanistique à un conseil d'achat saute plusieurs essais cliniques.
Mais la manière de poser la question change réellement. Nous imaginons volontiers le métabolisme comme une usine que l'hôte gère seul, avec des matières premières livrées du dehors. Ce travail rappelle qu'à côté vivent des collaborateurs qui fournissent le substrat, modifient les molécules et décident parfois si une voie est correctement alimentée. Avant « quoi ajouter », il devient pertinent de demander « qui le fabrique pour nous ».
Les questions à poursuivre sont désormais claires : quels profils alimentaires soutiennent les forts producteurs de N-MNA, quelle part du lien entre dysbiose et réparation lente passe par cette voie, et peut-on en faire un marqueur de santé mesurable. Ce qui est répondu n'est qu'un prologue ; la valeur se trouve plutôt du côté de ce qui reste sans réponse.
Commentaires