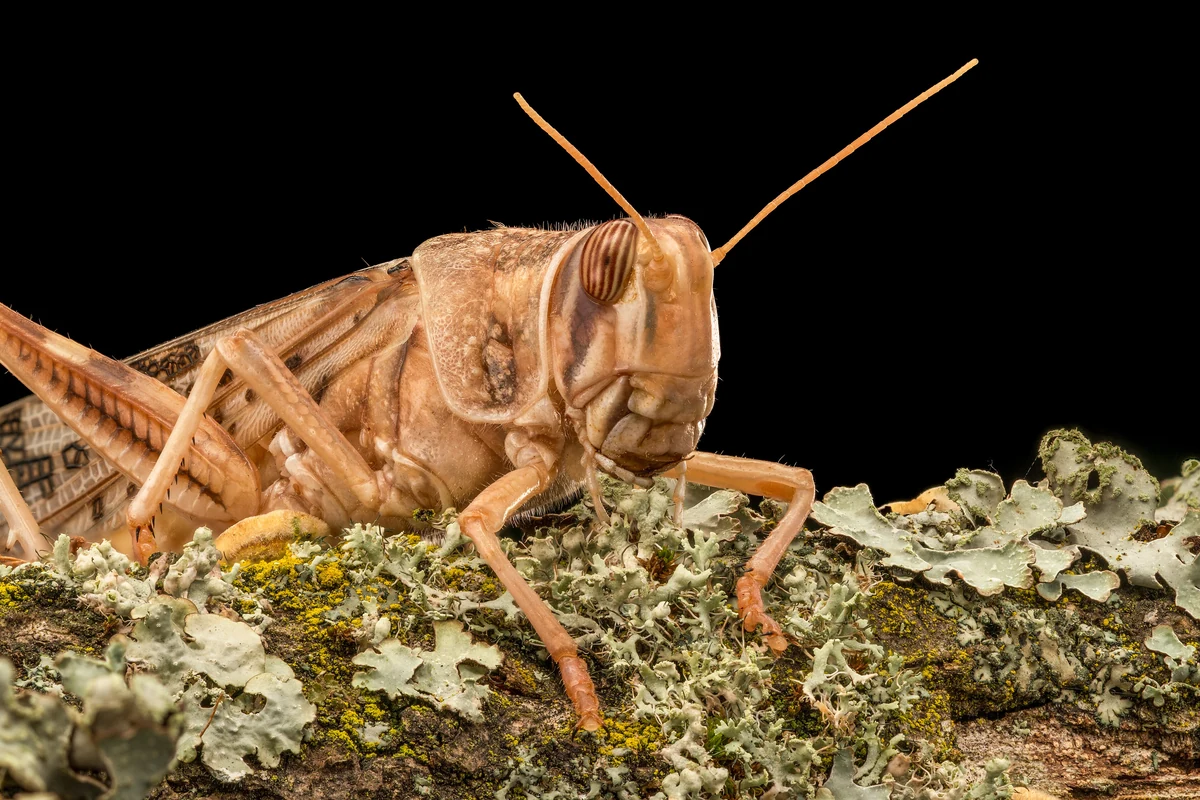
蝗災裡最讓人不舒服的畫面,往往不是鋪天蓋地啃光一片麥田,而是它們轉過頭來啃食同伴。同類相食在飛蝗裡並不是偶發的怪癖,而是能實實在在影響種群密度的變量:誰受傷、誰被吃、群體往哪走,都和這件事纏在一起。偏偏這樣一條左右生死的行為,長期以來只有現象,沒有清晰的信號解釋。
過去比較確定的一半是:群居型飛蝗會釋放某種保護性氣味,降低自己被同類捕食的風險。這更像一套剎車。可另一半一直空著——到底是什麼氣味在主動招呼同類過來咬,等於給這套行為裝油門?兩者缺一,我們對同類相食的理解就始終是半張圖。
11 月 18 日,一支來自中國農科院、長期鑽研害蟲基因組的研究組在《自然》刊出成果,把缺的那半張補上了。研究者最反直覺的一個判斷是:發信號的並不是蝗蟲自己,而是它傷口上富集的共生細菌。主體從昆蟲換成了微生物,整個問題的問法就變了。
團隊用氣味成分分析,從受傷飛蝗釋放的揮發物裡鎖定了關鍵分子——愈創木酚。它並非昆蟲腺體合成,而是傷口處共生細菌的代謝產物。換句話說,一具受傷的身體之所以開始「散發消息」,是因為定植在創面上的細菌在持續工作,把組織環境翻譯成了一串能被同類鼻子讀到的化學字符。
只找到一個分子還不夠,容易停在「相關」層面。研究者進一步鑑定出飛蝗感知愈創木酚的兩個關鍵嗅覺受體,並用基因編輯分別敲除:任意敲掉一個,愈創木酚就再也喚不動同類相食。這一步把鏈條從「A 和 B 一起出現」推到「拿掉中間環節,行為就消失」,因果才立得住。分子、受體、行為,三節被接成了一條可檢驗的線。
最耐人尋味的是濃度的雙向效應。低濃度的愈創木酚會激活受傷飛蝗的免疫防禦,提高它的存活率;一旦濃度越過某個臨界值,同樣這個分子卻會引來同類的攻擊和取食。救與殺,用的是同一串化學字符,分岔口只在劑量上。這種「單一信號、相反結局」的設計,在化學生態裡並不多見。
我更願意把它讀成一個閾值開關,而不是兩種物質在打架。身體不需要為「保護」和「清除」各造一套信號,只要讓同一信號的強度說話:輕微的傷,值得救;傷到一定程度、氣味濃到掩不住,個體對群體就變成了負擔和資源。閾值把連續的傷情翻譯成了離散的群體決策,這種簡潔很漂亮。
當然,細菌為什麼這麼做,論文給的是機制而非意圖。可以謹慎地理解為:傷口是感染與資源洩漏的入口,細菌代謝隨創面狀態變化,濃度因此成了受傷程度的誠實讀數;對同類而言,順著這個讀數行動,比逐個試探更划算。這是從生態功能上給的推測,不該寫成細菌有目的地「設計」了這場相食。
把視角轉到應用,這項研究最實在的落點是害蟲防控的思路變化。傳統辦法盯著「怎麼把蟲殺掉」,而一旦知道了誘發聚集與相食的具體分子和受體,就多出一條「操縱行為」的路:用合成類似物做誘集、用受體拮抗劑干擾信號、把愈創木酚當作早期監測的氣味標誌物。靶點越具體,工具就越不必是廣譜殺蟲劑。
對蝗災治理來說,早期預警往往比事後撲打更值錢。如果群體從散居轉向群居、受傷個體開始密集出現時,揮發物譜系會先於肉眼可見的蝗群發生變化,那麼布點採樣空氣裡的特徵分子,就有機會把防控窗口提前。這類「讀氣味」的監測,成本低、可連續,和遙感、田間調查正好互補。
但實驗室裡乾淨的濃度梯度,到了田間會立刻變複雜。風、溫溼度、植被吸附、背景氣味,都會把一條清晰的閾值曲線稀釋成模糊的帶狀;一個在培養皿裡準確的臨界濃度,未必等於開闊麥田裡有效的臨界濃度。從「能誘發」到「能預測野外種群」,中間隔著一整套環境標定。
還有幾處必須留白:這套受體—分子關係是否適用於其它蝗種和不同地理種群,兩個受體之間有沒有功能冗餘,長期用類似物干擾氣味會不會波及天敵與非靶標昆蟲,都還沒有答案。化學生態的干預一旦放進開放生態系統,副作用往往比藥效更難測。
所以這篇論文真正的分量,我認為是把「氣味」從一句現象描述,推進成分子—受體—行為—劑量的完整閉環,並且用基因編輯做了反向驗證。基礎研究交給應用的,從來不是一個能直接噴灑的成品方案,而是一組可檢驗、可干預的靶點。至於這些靶點能不能變成田埂上的工具,要看下一輪誰把環境標定和生態安全一起做紮實。
評論