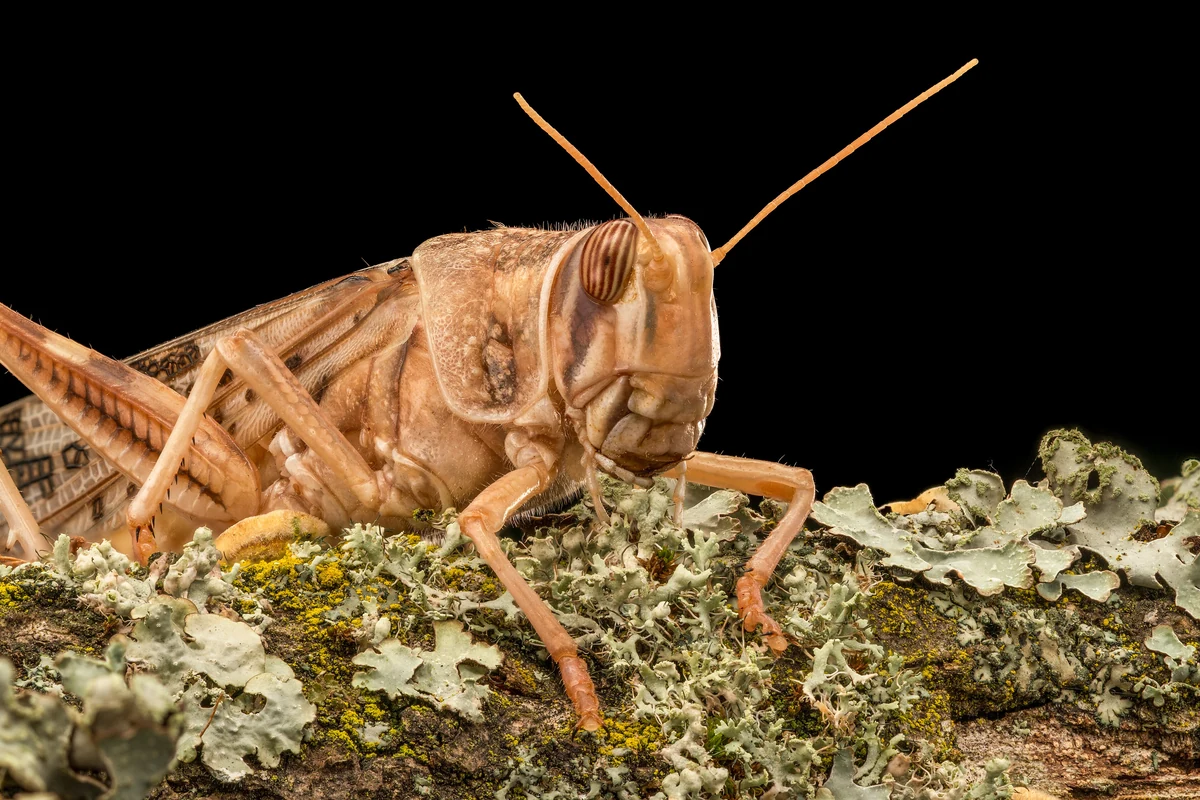
Durante décadas, o canibalismo entre gafanhotos migratórios foi arquivado como uma curiosidade mórbida de laboratório, não como uma variável séria. Hoje sabemos que ele altera de forma mensurável a densidade das populações e, portanto, merece ser tratado como mecanismo, e não como acaso. A pesquisa publicada na Nature em 18 de novembro dá um passo decisivo ao revelar o botão químico que liga e desliga esse comportamento.
Já se conhecia uma metade da história: os gafanhotos gregários emitem um odor que funciona como escudo e reduz o risco de serem devorados pelos próprios congêneres. Faltava, porém, a pergunta incômoda e inversa — que sinal, afinal, convida ativamente a mordida em vez de afastá-la. É nessa lacuna que o trabalho ganha originalidade, porque a natureza raramente constrói só o freio sem construir também o acelerador.
A resposta veio de onde quase ninguém procurava: da própria ferida. A equipe do Instituto de Genômica Agrícola da Academia Chinesa de Ciências Agrícolas mostrou que bactérias simbióticas que proliferam no tecido lesionado produzem um composto volátil, o guaiacol. Há uma ironia fina nesse arranjo — o chamado que atrai os algozes é fabricado pela vítima, ainda que por intermédio de seus microrganismos.
Por análise sistemática de odores, os pesquisadores isolaram a molécula e chegaram a dois receptores olfativos que respondem a ela. Identificar o emissor é só metade do rigor; nomear o sensor é o que transforma um cheiro em circuito. Essa distinção metodológica importa porque um sinal sem receptor conhecido continua sendo descrição, enquanto um sinal com receptor mapeado já é hipótese testável.
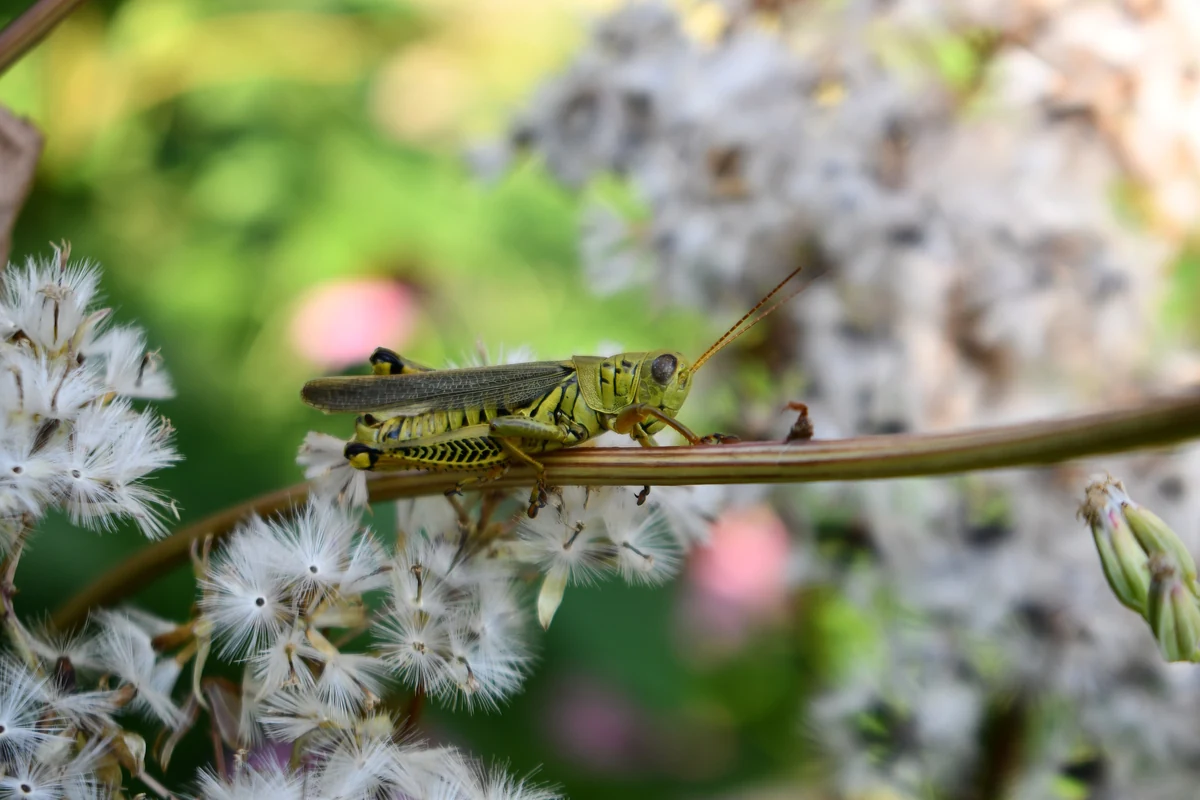
O passo seguinte foi o mais convincente: ao eliminar qualquer um dos dois receptores por edição genética, o guaiacol simplesmente deixou de induzir canibalismo. Aqui a pesquisa atravessa a linha que separa correlação de causalidade, e atravessa pelo método mais limpo, que é retirar a peça e observar o sistema falhar. Chamo isso de verificação inversa — em vez de acrescentar o sinal para ver o efeito, subtrai-se o intérprete para confirmar que o efeito dependia dele.
O achado mais notável, porém, é o comportamento bidirecional do mesmo composto. Em dose baixa, o guaiacol ativa as defesas imunes do indivíduo ferido e melhora suas chances de sobreviver; é, nessa faixa, um sinal de alarme interno e quase medicinal. A biologia economiza meios: não cria uma molécula para curar e outra para atrair, mas reaproveita uma só e delega à concentração a decisão final.
Acima de um certo limiar, a lógica inverte sem que a molécula mude de identidade: o mesmo guaiacol passa a atrair os congêneres, que então atacam e devoram o indivíduo lesionado. Estamos diante de um verdadeiro interruptor de limiar, em que um único sinal produz dois desfechos opostos separados apenas pela dose. É difícil imaginar desenho mais parcimonioso, e é justamente essa parcimônia que torna o resultado tão fácil de subestimar à primeira leitura.
Daí vem a relevância prática: se o interruptor é químico e dosável, o canibalismo deixa de ser fatalidade estatística e passa a ser alvo manipulável. Monitorar a presença do guaiacol no ambiente pode antecipar surtos de agregação, e modular o limiar oferece uma alavanca sobre a densidade populacional que nenhum inseticida de amplo espectro proporciona. A mudança conceitual é profunda — sai a lógica de matar o inseto e entra a de editar o seu comportamento.
Há uma elegância inegável em trocar veneno por informação, mas seria ingênuo tratá-la como solução automática. Inseticidas de amplo espectro são brutos e previsíveis; sinais químicos são sutis, contextuais e sensíveis ao cenário. Quem manipula comportamento mexe numa rede de interações, e não num alvo único, o que amplia tanto o alcance quanto a cautela necessária.
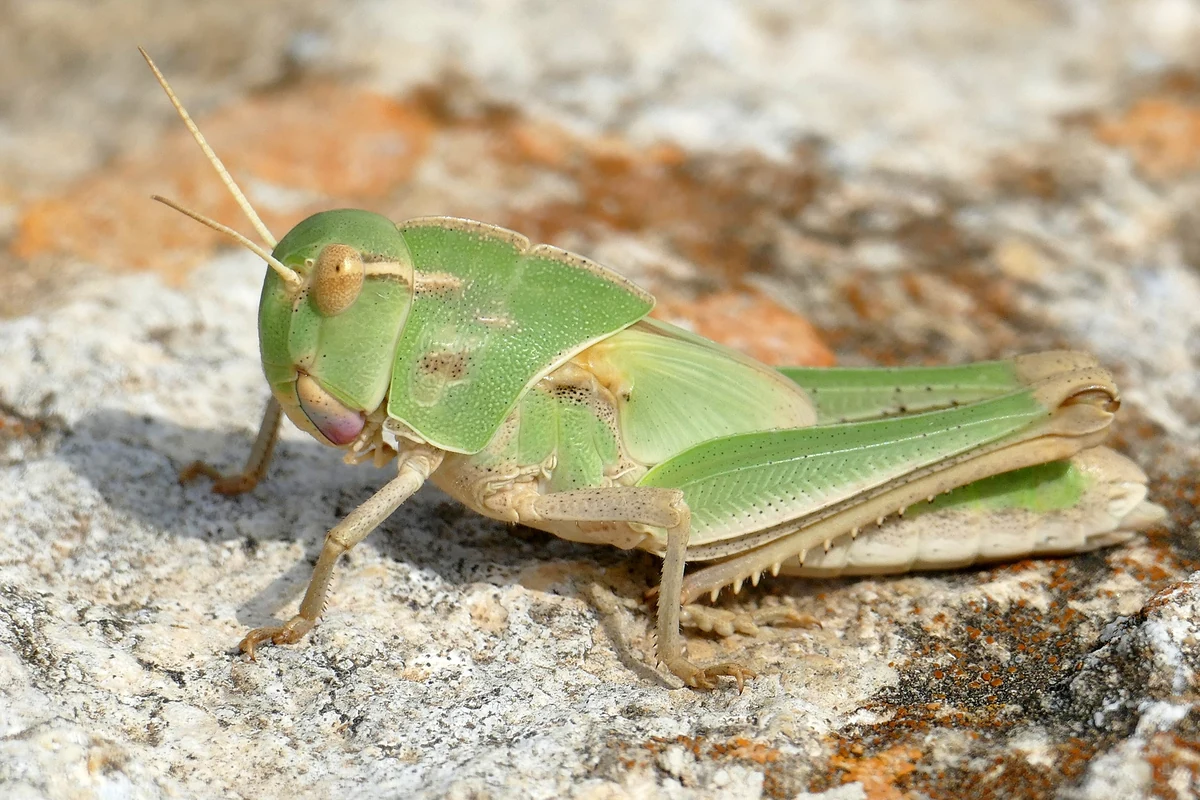
O maior abismo, a meu ver, está entre o gradiente controlado do laboratório e o campo aberto. Em uma câmara, a concentração é uma reta que o pesquisador desenha; lá fora, vento, umidade e adsorção no solo reescrevem essa reta a cada instante. Um limiar tão nítido no banco de ensaio pode virar uma zona borrada e imprevisível quando a molécula precisa atravessar ar em movimento e superfícies que a retêm.
Também permanecem em aberto as perguntas de segurança ecológica, e fingir que elas estão resolvidas seria o erro mais caro. Alterar um sinal que organiza a densidade de uma praga mundial pode repercutir em predadores, competidores e na dinâmica de toda a comunidade onde o gafanhoto entra. A mesma precisão que torna a ferramenta atraente é o que exige um inventário paciente de efeitos indiretos antes de qualquer aplicação em escala.
Vale ler o estudo menos como uma receita pronta e mais como uma lição de método. A equipe não se contentou em descrever um cheiro: isolou a molécula, nomeou os receptores, removeu cada um deles e só então afirmou causalidade. Essa disciplina de prova inversa é o que separa uma descoberta publicável de uma especulação elegante, e é o padrão que a ecologia química deveria cobrar de si mesma com mais frequência.
No fim, o que fica não é a promessa de uma solução definitiva nem o espanto diante do canibalismo, mas uma ideia simples e dura: a dose é informação. Um único volátil, produzido por bactérias simbióticas numa ferida, decide entre proteger e entregar o próprio indivíduo aos seus iguais. Reconhecer esse interruptor já muda o modo de observar a praga; usá-lo com segurança ainda é um capítulo que a ciência precisa escrever com calma.
Comentários