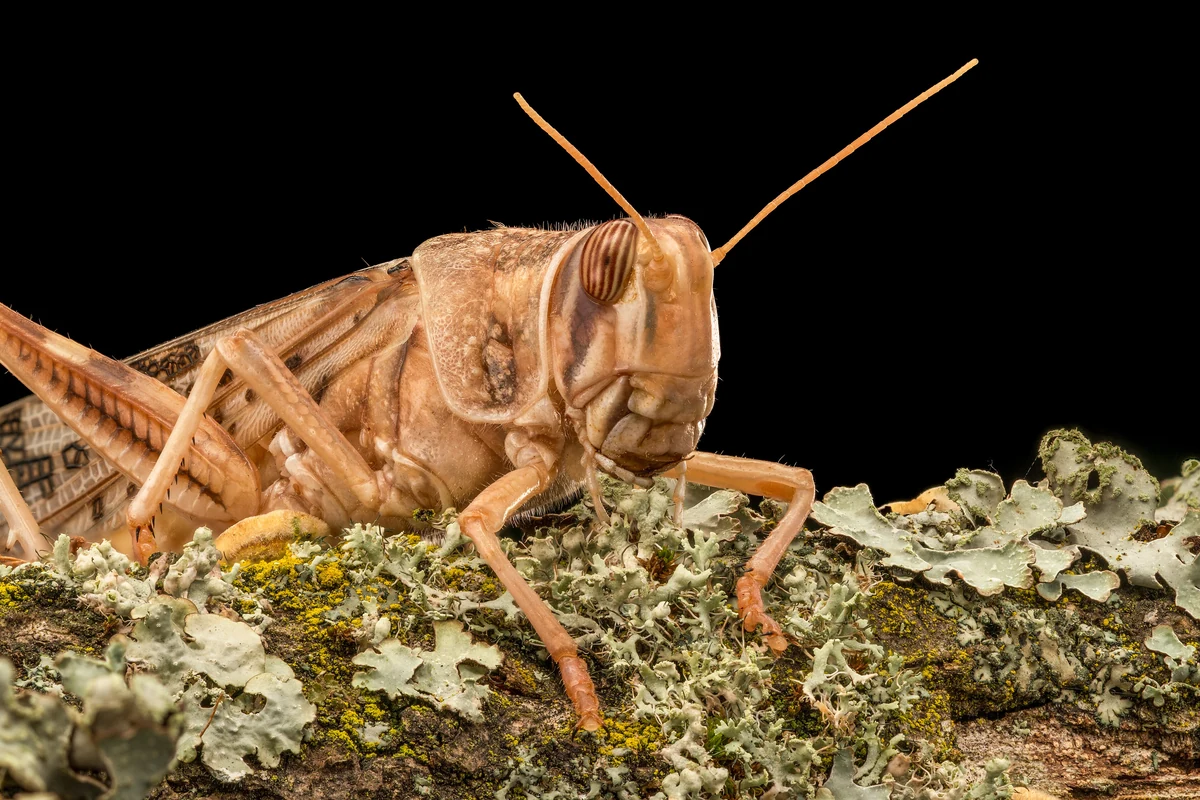
Le cannibalisme n'est pas une anecdote de naturaliste : chez les insectes grégaires, c'est un levier de régulation qui pèse sur la densité même des populations. Le traiter comme un simple « comportement » plutôt que comme une question de chimie a longtemps constitué notre angle mort, et c'est précisément cet angle mort que l'étude parue dans Nature le 18 novembre vient combler.
Le criquet migrateur compte parmi les ravageurs les plus coûteux de la planète, parce que tout, chez lui, dépend du nombre : la densité déclenche la grégarisation, la grégarisation déclenche les pullulations. Dans un tel système, tout facteur qui retranche une part mesurable d'individus mérite d'être pris au sérieux, et l'on sait que la morsure entre congénères fait exactement ce travail.
On savait déjà que les criquets grégaires émettent une odeur protectrice, une sorte de panneau « ne pas manger » qui réduit sensiblement le risque d'être dévoré par un voisin. Cette moitié du mécanisme était correctement décrite, et elle suffisait à expliquer pourquoi certains individus échappent à la morsure sans jamais expliquer pourquoi d'autres y succombent.
Il manquait pourtant l'autre moitié : quel signal, à l'inverse, appelle activement les congénères à s'approcher et à mordre ? Les disciplines avancent souvent moins par découverte d'un mécanisme que par repérage d'un blanc laissé pour vide, et ce blanc-là était d'autant plus trompeur qu'il ressemblait à une absence de réponse plutôt qu'à une question posée.
L'équipe de l'Institut de génomique agricole de l'Académie chinoise des sciences agricoles a retourné le problème du côté de la blessure : ce ne sont pas les tissus du criquet qui parlent, mais des bactéries symbiotiques qui prolifèrent dans la plaie et libèrent un composé volatil, le gaïacol. L'idée est dérangeante et féconde, car l'appel au festin n'émanerait pas de la victime elle-même mais de ses hôtes microscopiques.
Par analyse des odeurs, les chercheurs ont isolé la molécule du mélange puis identifié deux récepteurs olfactifs dont elle dépend. Transformer un « ça sent » en « tel pic chromatographique produit tel acte » est un travail ingrat, mais c'est le seul moyen de faire sortir l'olfaction du domaine de l'impression pour la faire entrer dans celui de la mesure.
L'étape la plus convaincante est pourtant l'inverse : supprimer l'un ou l'autre de ces récepteurs par édition génétique, et le gaïacol cesse de déclencher le cannibalisme. On passe ainsi de la corrélation à la causalité par la voie la plus sûre qui soit, démonter l'interrupteur pour vérifier que la lumière s'éteint : la molécule, le récepteur et la conduite ne forment plus dès lors qu'une seule ligne vérifiable.
Le résultat le plus remarquable tient à un renversement de sens : à faible dose, le gaïacol active les défenses immunitaires du blessé et améliore sa survie ; au-delà d'un seuil, la même molécule attire les congénères qui l'attaquent et le dévorent. Un signal unique, deux issues opposées, et pour toute frontière une simple différence de concentration : voilà qui devrait rendre prudents ceux qui raisonnent encore en « molécule bénéfique » ou « molécule nocive ».
Je le lirais volontiers comme un interrupteur à seuil, plus économe que deux circuits distincts, l'un pour soigner et l'autre pour attirer, et l'évolution raffole de cette parcimonie. Mais un circuit économe est aussi un circuit fragile : déplacer légèrement la dose suffit à inverser le destin de l'individu, ce qui rend le système à la fois élégant et délicat à manipuler.
L'intérêt appliqué change du même coup de nature : au lieu de « tuer » à coups d'insecticides à large spectre, on envisage de moduler un comportement. Ce n'est pas une victoire de la douceur, c'est une victoire de la précision ; or une précision accrue réduit les dégâts collatéraux tout en rendant les rétroactions écologiques plus difficiles à anticiper.
Concrètement, la piste ouverte est double : disposer d'une cible moléculaire pour moduler le cannibalisme, et disposer d'un indicateur olfactif pour surveiller et contrôler les populations. Si une odeur suffit à ramener la densité sous contrôle, la lutte cesse d'être une affaire de surface épandue pour devenir une affaire d'information diffusée, ce qui déplace l'effort de l'épandage vers le dosage.
Reste la distance, peu spectaculaire mais décisive, entre le gradient propre du laboratoire et le champ ouvert : le vent disperse, l'humidité dilue, les surfaces adsorbent, et la belle ligne de seuil se change en nuage. Un résultat obtenu en enceinte close ne préjuge pas de son comportement à l'air libre, et c'est précisément là que bien des élégances moléculaires s'évanouissent.
La question qui demeure n'est donc pas de savoir si l'interrupteur fonctionne, mais qui d'autre, dans l'écosystème, est capable de l'entendre, et ce qu'un apport exogène de gaïacol déplacerait ailleurs que chez le criquet. Tant que la sécurité écologique n'a pas été instruite avec la même rigueur que la causalité, la réserve n'est pas un manque d'enthousiasme : c'est la seule attitude professionnelle.
Commentaires