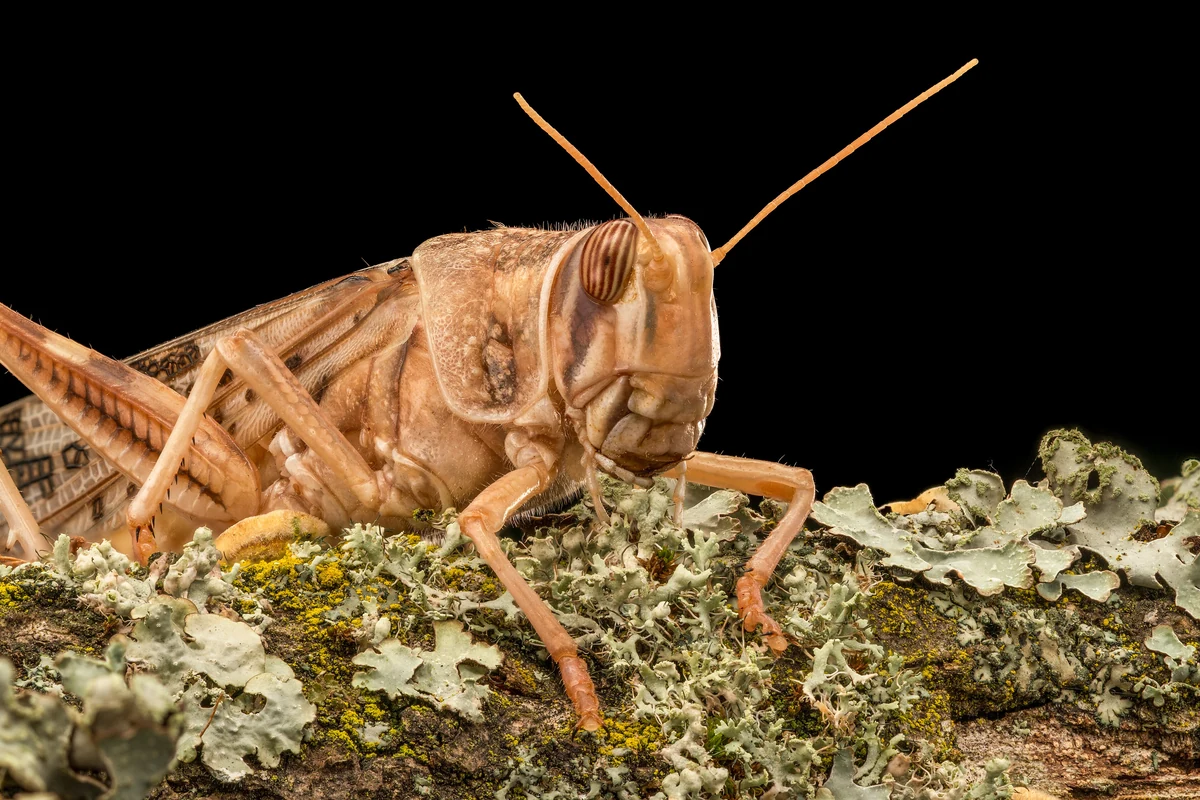
Lo más inquietante de una plaga de langostas no es el campo arrasado, sino el momento en que los insectos empiezan a devorarse entre sí. El canibalismo de la langosta migratoria no es una anécdota de laboratorio: es una variable que modifica de forma medible la densidad de población y, con ella, la dirección en que se mueve el enjambre. Durante décadas tuvimos el fenómeno bien descrito y la señal que lo explica, en cambio, bastante mal; esa asimetría dice mucho de cómo se suele confundir describir con comprender.
La mitad conocida del rompecabezas era un freno. Se sabía que las langostas gregarias emiten un olor protector que reduce el riesgo de ser comidas por sus propios congéneres, una suerte de salvoconducto químico. Faltaba la otra mitad: ¿qué olor convoca activamente a los demás a acercarse y morder? Sin ese acelerador, cualquier explicación del canibalismo queda convertida en un diagrama a medias, y un diagrama a medias suele inducir a error más que la ignorancia completa.
El 18 de noviembre, un equipo del Instituto de Genómica Agrícola de la Academia China de Ciencias Agrícolas publicó en Nature la pieza que faltaba. Su conclusión más contraintuitiva es que la señal no la fabrica el insecto: ¡la fabrican las bacterias simbióticas que proliferan en la herida de un individuo lesionado! Cambiar el emisor de «animal» a «microbio» obliga a reformular la pregunta entera: ya no se trata de qué avisa la langosta, sino de qué cuenta su herida.
Mediante análisis de olores, los investigadores aislaron del cóctel volátil que desprende una langosta dañada una molécula concreta, el guayacol. No sale de ninguna glándula del insecto: es un metabolito de esas bacterias enriquecidas en el tejido abierto. Dicho de otro modo, un cuerpo herido empieza a emitir porque los microbios del lugar traducen sin descanso el estado local a caracteres químicos que las antenas de un vecino saben leer, y esa traducción convierte una lesión privada en un anuncio público.
Aislar una molécula no basta, y aquí conviene no confundir correlación con causa. El equipo identificó dos receptores olfativos clave y los eliminó por separado mediante edición genética: suprimido cualquiera de los dos, el guayacol dejó de inducir canibalismo. Ese gesto inverso es el que sostiene de verdad la cadena, porque quitar el eslabón del medio y ver desaparecer la conducta pesa más que cien gráficas que suban y bajen juntas; molécula, receptor y conducta quedan así unidos en una sola línea comprobable.
Lo más notable es el efecto bidireccional de la concentración. En dosis bajas, el guayacol activa las defensas inmunitarias del individuo herido y mejora su supervivencia; por encima de un umbral, esa misma molécula atrae a los congéneres para que lo ataquen y lo devoren. ¡Rescatar y eliminar, escritos con los mismos caracteres químicos y separados solo por la dosis! En ecología química, una señal única con dos desenlaces opuestos es una arquitectura rara, y por eso mismo merece más atención que un nuevo compuesto aislado.
Yo lo leería como un «interruptor de umbral» y no como dos sustancias en competencia. Al sistema no le hace falta fabricar una señal para proteger y otra para sacrificar: le basta con dejar que hable la intensidad de una sola. Una herida leve merece ser salvada, mientras que un olor demasiado intenso, imposible ya de disimular, convierte al individuo en carga y en recurso para el grupo; el umbral transforma un daño continuo en una decisión colectiva discreta, y en esa economía hay una elegancia real que ningún modelo de dos señales explicaría igual de bien.
Que las bacterias hagan esto es cuestión de mecanismo, no de intención, y el artículo es cuidadoso en ese punto. Una lectura prudente es que la herida funciona a la vez como puerta de entrada de infecciones y como fuga de recursos, de modo que el metabolismo bacteriano sigue de cerca el estado del tejido y la concentración acaba siendo un indicador honesto de la gravedad. Para un congénere, fiarse de ese indicador resulta más barato que examinar uno por uno a todos los vecinos; conviene, eso sí, no leer en ello propósito alguno donde basta con química y azar.
Llevado a la aplicación, el cambio de planteamiento vale más que cualquier molécula suelta. La pregunta clásica era cómo matar al insecto con insecticidas de amplio espectro; una vez conocidos la molécula y el receptor que disparan la agregación y el canibalismo, se abre la vía de manipular la conducta, con análogos sintéticos como cebo, antagonistas que bloqueen el receptor o el propio guayacol como marcador de olor para vigilancia temprana. ¿Para qué seguir rociando todo el campo cuando se puede interferir una sola conversación química? Cuanto más específico es el blanco, menos necesario resulta el remedio indiscriminado.
Para quien gestiona una plaga, anticiparse suele rendir más que reprimir cuando el enjambre ya está a la vista. Si el perfil de volátiles cambia antes de que la agregación sea visible, tomar muestras de aire y buscar moléculas características podría adelantar la ventana de intervención. Este tipo de monitorización es barata y continua, y no viene a sustituir a las imágenes de satélite ni a los muestreos de campo, sino a completar un hueco que ninguna de las dos cubre bien: lo que ocurre justo antes de que el problema se vuelva visible.
El gradiente limpio del laboratorio, eso sí, se ensucia enseguida a cielo abierto. El viento, la humedad, la temperatura, la adsorción sobre la vegetación y el ruido de fondo de otros olores convierten una curva de umbral nítida en una banda borrosa. Una concentración crítica exacta en una placa no tiene por qué ser la que opera en un trigal, y entre «puede inducir» y «puede predecir poblaciones silvestres» media toda una campaña de calibración ambiental que rara vez cabe en el artículo que la inspira.
También quedan incógnitas que sería deshonesto barrer debajo de la alfombra. No está claro que la relación entre molécula y receptores se mantenga en otras especies de langosta o en poblaciones geográficamente lejanas, ni si los dos receptores son funcionalmente redundantes, ni qué ocurre a largo plazo si se altera de forma sostenida un olor del que dependen también depredadores e insectos no diana. En un ecosistema abierto, los efectos secundarios acostumbran a ser más difíciles de medir que la eficacia, y esa dificultad no desaparece porque el resultado de laboratorio sea limpio.
Para mí, el peso real del trabajo está en haber promovido el olor de etiqueta descriptiva a circuito completo: molécula, receptor, conducta y dosis, con la edición genética como comprobación inversa. Lo que la ciencia básica entrega a la aplicación nunca es un producto listo para esparcir, sino un conjunto de dianas comprobables sobre las que se puede intervenir. Que esas dianas lleguen a convertirse en herramientas al borde de una parcela dependerá de quien haga después, y a la vez, el trabajo poco lucido de la calibración ambiental y la seguridad ecológica.
Comentarios